Cell论文揭示有丝分裂“防断”新因子DDIAS:神经发育“护链使者”,BRCA缺陷癌细胞合成致死新靶点
来源:生物谷原创 2026-08-28 10:02
在本研究中,他们揭示DDIAS是TOPBP1-CIP2A复合物在有丝分裂DNA损伤应答中的成员,该复合物保护染色体完整性,尤其在神经干细胞和BRCA缺陷癌细胞中。
维持基因组稳定性对于所有生物体避免细胞死亡和疾病至关重要。罕见的遗传性染色体不稳定综合征(如Bloom综合征、范可尼贫血和奈梅亨断裂综合征)便凸显了这一点,这些疾病以小头畸形、免疫缺陷、癌症易感性增加及其他病理表现为特征。因此,细胞进化出了一个广泛的DNA损伤应答网络,用于检测并协调DNA损伤的修复;在间期,该网络可触发检查点激活和细胞周期停滞,直至修复完成。这确保细胞不会带着断裂的染色体进入有丝分裂——否则将对基因组稳定性和细胞生存造成灾难性后果。
有丝分裂给基因组维护带来了独特挑战,因为一旦细胞进入分裂程序,DNA损伤检查点和大多数DNA修复通路即被关闭。然而,已有明确证据表明,细胞确实会启动有丝分裂特异性DNA损伤应答,这对于防止染色体错误分离和微核形成至关重要。
这一应答的早期阶段与间期相似:DNA双链断裂(DSBs)激活ATM激酶,后者磷酸化组蛋白H2AX并招募接头蛋白MDC1。然而,在有丝分裂中,RNF8、RNF168和53BP1的招募被抑制,取而代之的是MDC1招募一个含TOPBP1和CIP2A的复合物至DSB位点。TOPBP1可形成丝状结构,桥接离散的MDC1聚焦点,这催生了假说:TOPBP1-CIP2A复合物通过束缚断裂的染色体片段,直至有丝分裂退出后修复完成,来维持染色体完整性。随后的两项研究为此提供了进一步证据,证明TOPBP1和CIP2A在染色体碎裂过程中促进破碎染色体的重新组装。
更近期研究表明,包括微同源介导的末端连接(MMEJ)在内的易错DNA修复通路在有丝分裂中具有活性,提示有限的DNA修复实际上可在该细胞周期阶段发生。此外,有丝分裂中存在解开或切割由前一S期不完全复制导致的姐妹染色单体缠结,并完成DNA合成以避免姐妹染色单体不分离的机制。近期证据提示TOPBP1和CIP2A可能在这些过程中的部分或全部发挥作用,但由于观察结果相互矛盾,这一点仍不明确。
理解受损或不完全复制的染色体在有丝分裂中如何被保护对人类健康至关重要,因为这对于BRCA1或BRCA2缺陷型癌症的存活至关重要。然而,许多关键问题仍未解决。TOPBP1和CIP2A均不含已知的DNA结合结构域,提示至少需要另一个因子将它们连接到DNA损伤位点。调控该通路组装的机制也尚不清楚。此外,尽管已鉴定出大量由间期DNA修复通路缺陷引起的人类疾病,但迄今尚未有任何遗传病与有丝分裂DNA损伤应答异常相关联。因此,破坏TOPBP1-CIP2A通路对人类生理的病理影响仍然未知。
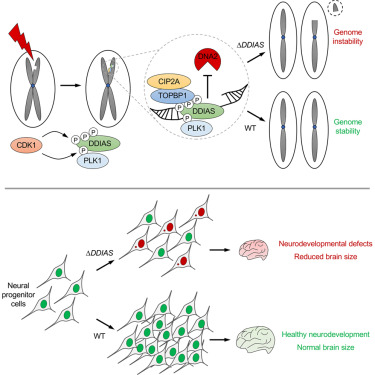
在一项新的研究中,研究团队在两名表现有染色体不稳定综合征样临床特征的个体中,鉴定出功能研究较少的DDIAS基因的双等位基因失活突变。他们证明DDIAS是有丝分裂TOPBP1-CIP2A复合物的第三个核心组分,它利用其单链DNA(ssDNA)结合结构域在细胞分裂过程中保护DNA损伤免受异常核酸酶加工,尤其在BRCA缺陷细胞中至关重要。最后,利用斑马鱼、人脑类器官和由诱导多能干细胞(iPSCs)分化的神经祖细胞(NPCs),他们证明DDIAS在神经发育过程中在限制DNA损伤方面发挥关键且进化保守的作用。
在本研究中,他们揭示DDIAS是TOPBP1-CIP2A复合物在有丝分裂DNA损伤应答中的成员,该复合物保护染色体完整性,尤其在神经干细胞和BRCA缺陷癌细胞中。他们的数据支持一个模型:DDIAS在TOPBP1和CIP2A招募下游发挥作用,通过其N端OB-fold赋予复合物ssDNA结合活性,且该活性受CDK1和PLK1激酶调控以确保其功能特异于有丝分裂。
TOPBP1和CIP2A已被牵涉于有丝分裂中基因组维持的多种通路,包括MiDAS、DNA末端束缚以及通过POLQ依赖性MMEJ进行的DSB修复。他们未观察到DDIAS在促进上述任何过程中有显著作用。相反,他们提出TOPBP1-CIP2A复合物招募DDIAS,使其结合并保护ssDNA损伤免受异常核酸酶加工。这与DNA修复酶必须被严格调控以避免不适当或过早激活的概念一致,且核酸酶若无约束可促进ssDNA间隙的病理性加工。
Durocher及其同事独立获得了相似且互补的结果,他们也鉴定DDIAS为TOPBP1-CIP2A相关有丝分裂DNA损伤应答因子,结合ssDNA并在BRCA缺陷细胞中促进基因组稳定性,进一步支持了有丝分裂ssDNA损伤是该通路所对抗的关键脆弱点的观点。
在间期细胞中,RAD51可防止DNA2和其他酶对ssDNA的异常核酸酶消化,但在有丝分裂中RAD51加载被抑制。或许DDIAS在有丝分裂中替代执行这一ssDNA保护功能,类似于Shieldin复合物在间期利用其含OB-fold的SHLD2亚基来对抗DSB处不适当的DNA末端切除。有丝分裂中TOPBP1-CIP2A-DDIAS复合物所结合的含ssDNA底物仍有待确定。然而,BRCA缺陷与DDIAS缺失之间的合成致死性表明,S期产生的DNA损伤很可能是底物,因为已知BRCA缺陷细胞在复制过程中会积累未复制区域、ssDNA间隙和DSB。
本研究提供了证据,证明TOPBP1-CIP2A介导的有丝分裂DNA损伤应答的破坏可导致人类发育障碍。尽管致病性DDIAS变异目前仅在一个家族中被鉴定,但因果关系得到了跨独立脊椎动物模型系统的汇聚证据支持。DDIAS缺失减少人脑类器官生长,选择性地增加NPC中的DNA损伤和染色体不稳定,并在斑马鱼中引起小头畸形样表型。表达野生型人DDIAS(而非TOPBP1结合突变的3A突变体)可挽救该表型,证明DDIAS的神经发育功能很可能依赖于其在TOPBP1-CIP2A有丝分裂通路中的作用。
NPCs对DDIAS缺失的选择性脆弱性为患者和斑马鱼表型的神经发育特异性提供了一种合理解释。其成因仍然是一个悬而未决的重要问题。由DNA损伤应答基因或有丝分裂相关基因缺陷导致的小头畸形已被充分证实,且长期以来已知缺乏非同源末端连接因子的小鼠胚胎致死性是由中枢神经系统特异性DNA损伤诱导的细胞凋亡所致。虽然神经干细胞是发育中大脑中分裂最快的细胞之一,但其他细胞谱系在发育过程中或出生后组织中的分裂速度同样快。因此,增殖速率不太可能是驱动NPCs对DDIAS缺失敏感性的唯一因素。NPCs对凋亡的超敏性和高内源性DNA断裂负荷也有报道。事实上,小鼠NPCs中复发性DSB已被鉴定聚集在长的神经基因中,可能是转录-复制冲突的结果。因此,NPCs可能比其他大多数细胞类型更易带着未复制区域和DNA断裂进入有丝分裂,因此高度依赖TOPBP1-CIP2A-DDIAS来维持染色体稳定性。
研究局限性
仍有几个重要问题有待解决。首先,DDIAS、RPA、DNA2以及其他可能的DNA末端切除因子之间的分子关系尚未阐明。目前尚不清楚DDIAS缺陷有丝分裂细胞中RPA积累是反映了未能阻止RPA结合有丝分裂ssDNA,还是DNA2依赖性加工增加,或两者兼有。同样,由于检测DDIAS Ser676和Thr868磷酸化的技术困难,PLK1与DDIAS结合的确切作用仍不清楚。
其次,TOPBP1、CIP2A和DDIAS的寡聚化状态仍有待确定。特别是DDIAS中存在两个TOPBP1 BRCT7结合基序(Ser676和Ser993),提示可能存在高阶组装或功能冗余,这些问题需要结构研究。
第三,虽然他们的数据表明DDIAS在测试条件下对MiDAS、DNA末端束缚或MMEJ无显著贡献,但他们不能排除细胞类型特异性效应或在不同损伤类型或有丝分裂阶段的修复中的情境依赖性功能。例如,他们仅在早中期细胞中测量了γH2AX聚焦点消退;因此,他们不能排除DDIAS在有丝分裂后期DSB修复中的作用。
最后,尽管他们的遗传和实验数据强烈支持DDIAS在脊椎动物神经发育中的作用,但人类DDIAS缺陷的临床谱目前仅来自一个近亲婚配家庭,未来需要通过鉴定更多受累个体来进行验证。(生物谷Bioon.com)
参考文献:
Kaima Tsukada et al, DDIAS shields single-stranded DNA in mitosis and promotes vertebrate brain development, Cell (2026). DOI: 10.1016/j.cell.2026.07.041.
版权声明 本网站所有注明“来源:生物谷”或“来源:bioon”的文字、图片和音视频资料,版权均属于生物谷网站所有。非经授权,任何媒体、网站或个人不得转载,否则将追究法律责任。取得书面授权转载时,须注明“来源:生物谷”。其它来源的文章系转载文章,本网所有转载文章系出于传递更多信息之目的,转载内容不代表本站立场。不希望被转载的媒体或个人可与我们联系,我们将立即进行删除处理。