2026年9月Science期刊精华
来源:生物谷原创 2026-09-29 10:54
2026年9月份即将结束,9月份Science期刊又有哪些亮点研究值得学习呢?小编对此进行了整理,与各位分享。
1. Science论文揭示T细胞受体配对的“锁钥法则”,链替换系统揭示单链强信号无法决定特异性
DOI: 10.1126/science.adx3863
传统T细胞的识别由T细胞受体(TCR)的α链和β链配对共同介导。从受体序列预测靶抗原,反之亦然,具有多种诊断和治疗应用。由于TCR通过随机的基因重排过程产生,其巨大的潜在多样性远远超过任何单个个体中有限的T细胞数量。因此,不同个体针对同一抗原应答时通常使用不同的受体,这使得推导特异性的通用规则变得复杂。即便如此,在针对同一分子靶点的应答中,一条或两条受体链中常观察到共享的序列基序。
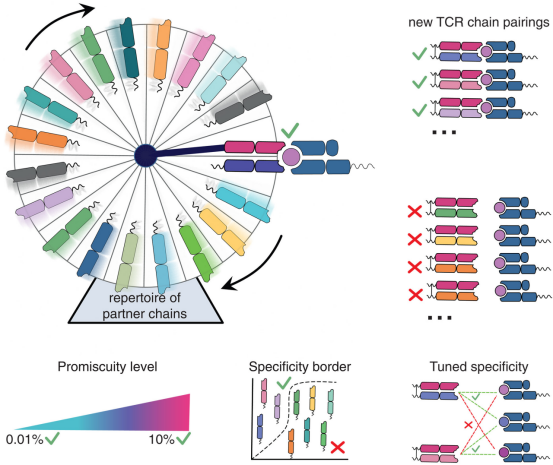
在一项新的研究中,研究人员探讨了每条链在TCR识别中的相对作用,特别是序列基序集中在一链中的情况。他们开发了一种链替换系统,能在大细胞群体中选择性移除内源性TCR链,并用一条携带针对已知靶点的强基序的链进行替换。实际上,固定一条链创造了一个“生物搜索引擎”,扫描健康供体自身的T细胞,以“钓出”与靶标结合兼容的配对伙伴。这使得研究人员能在少数个体中观察到原本需要采样数百万人才能发现的多样性水平。
研究人员发现,几乎所有链组合(>94%)都能在细胞表面形成稳定的受体,但只有一小部分(约0.1%至10%)能够识别预期靶标。在10个抗原靶点中,他们回收了超过70,000个特异性受体,大幅扩展了已知的目录。由于大多数(90%至99.9%)随机候选伴侣链无法维持表位识别,他们的数据突显了仅依赖单链数据来推断特异性的局限性。
2. Science论文:姐妹染色单体并非完美对齐——复制后存在系统性定向偏移,黏连蛋白维持巨型尺度“寄存器移位”
DOI: 10.1126/science.aea4611
DNA复制产生两条姐妹染色单体,它们必须获得特定的三维构象以支持基因组功能和忠实分离。黏连蛋白复合物以两种方式帮助组织复制后的染色体:一部分黏连蛋白在每条染色单体内部挤出染色质环,而另一部分“黏合性”黏连蛋白则将两条姐妹染色单体拴在一起。尽管姐妹染色单体在DNA序列上完全相同,但复制过程本身具有内在不对称性。每条染色单体继承一条不同的亲本链,而新生链则由复制叉处不同的前导链和后随链机器合成。这种复制的分子不对称性是否以及如何影响复制后染色体的大尺度结构,此前一直未知。
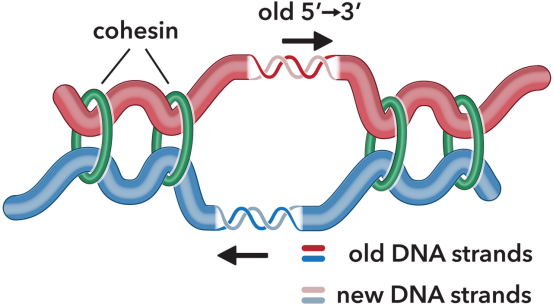
为了研究姐妹染色单体之间的相对排列方式,研究人员在一项新的研究中采用了两种互补的“姐妹分辨”方法。首先,他们使用了姐妹染色单体敏感的染色体构象捕获技术(scsHi-C),该技术用链特异性特征突变标记新合成的DNA;他们扩展了其分析流程,以确定两条姐妹链上接触位点沿基因组的相对顺序,从而揭示它们之间任何偏移的方向。其次,他们使用链特异性荧光成像来测量单个细胞中成对姐妹位点之间的物理距离。为了解析黏连蛋白的作用,他们选择性地耗尽了环挤出型或姐妹拴合型黏连蛋白群体。在这些扰动指导下,他们利用聚合物模拟来确定两条姐妹之间的黏合性连接分布如何解释实验数据。
两种检测都揭示了一种系统性的、定向的错配:每条姐妹染色单体相对于其伙伴,沿其所继承链的5′→3′方向发生了位移。在scsHi-C中,反映这种偏移的接触在约1 Mb分离距离处富集了约两倍;在成像实验中,对应位点偏移约120 nm。这种偏移是全基因组范围的,且在很大程度上与复制时间、染色质区室和结构域边界无关。在耗尽环挤出型黏连蛋白后该偏移仍然存在,但在移除姐妹拴合型黏连蛋白后则消失,从而确定黏合性黏连蛋白是其决定因素。聚合物模拟表明,沿姐妹染色单体上的黏合性黏连蛋白位置存在约100 kb的定向错配,足以在兆碱基尺度上重现这种不对称性。
3. Science论文解密脾脏“安检”血小板:清除过度活化细胞,防止血栓、肺栓塞与炎症损伤
DOI: 10.1126/science.aec7230
血小板在止血中至关重要,因为它们通过迅速封闭受损血管来防止出血。因此,它们天生能够在血管系统中从平静、静息状态急剧切换到活跃状态。这种敏感性对血管完整性必不可少,但代价是:已知血液中循环的活化血小板会导致心脏病发作、中风和感染期间的组织损伤,而限制全身性血小板活化的保护机制却鲜有表征。
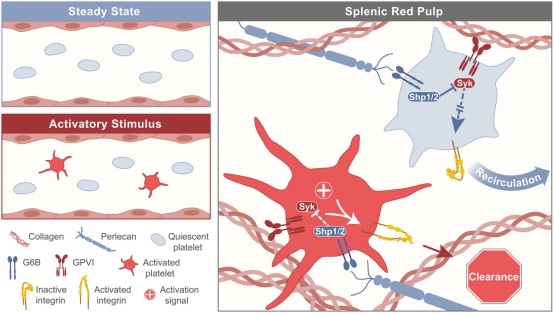
血细胞通常留在血管内,受到保护,免受可能触发不必要活化的组织成分影响。脾脏与众不同,因为血细胞在红髓中完全离开血管,缓慢穿过组织,然后重新进入循环。在一项新的研究中,研究团队推断,这种不寻常的解剖结构可能使脾脏能够检查路过的血小板,并选择性清除那些过度活跃的血小板,同时让静息血小板通过。他们测试了这一想法,研究了疾病模型中脾脏血小板清除的影响,并揭示了使脾脏能够选择性清除活化血小板的分子信号。
利用小鼠活体成像和输血模型,他们发现由血栓形成或炎症信号激活的血小板被脾脏捕获和清除的效率远高于静息血小板。阻断这一脾脏过滤器——无论是通过切除脾脏还是暂时切断其血液供应——都会在小鼠疾病模型中增强血栓形成、肺损伤和肺栓塞。检查患者组织并在心脏病发作患者中进行细胞成像,他们发现了匹配的证据,表明人类脾脏在这些条件下也会增大并积累活化血小板,表明同样的保护系统在人类中运作。
他们发现,在小鼠中,穿过脾脏红髓的血小板遇到细胞外基质蛋白,这些蛋白触发血小板中的活化信号。同时,一个独立的抑制性表面受体G6b传递反制信号,通常抑制这种活化,使健康血小板重新进入血流。然而,已经过度活化的血小板——例如在凝血事件后——不受抑制信号约束。相反,它们的活化信号占主导,触发整合素参与并在脾脏中停滞,标记它们被脾脏常驻清道夫细胞永久清除。
4. Science论文揭示细胞器“指纹”解码组织健康:sOrganellomics绘制肝脏细胞状态马赛克
DOI: 10.1126/science.ady6372
构成人体器官的细胞并非完全相同;即使在同一组织内,细胞也可以采取不同的功能状态,执行互补的专门任务,并适应不断变化的条件。绘制这种多样性主要依赖于分析基因活动,而这只捕捉了细胞组织的一个层面。然而,许多核心功能由细胞器——细胞内部的区室,如产生能量的线粒体和储存脂肪的脂滴——执行,它们的形状、丰度和排列直接反映并影响细胞正在做什么。细胞器结构的变化并非仅仅是相关性的:在肥胖驱动的重塑后恢复正常内质网结构,可挽救胰岛素反应和葡萄糖平衡,表明细胞器组织可以因果性地决定细胞功能。然而,在完整组织中系统测量数千个细胞的这些结构特征的工具一直缺乏。
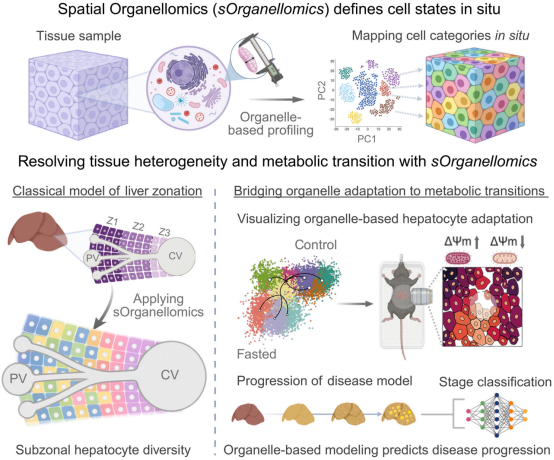
基于图像的细胞器形态分析方法对体外培养的细胞效果很好,但完整组织不同:细胞是三维的、紧密堆积的,且形状高度可变。准确测量单个细胞内的细胞器需要从密集的体积图像堆栈中分割数百万个结构,直到最近这一任务仍没有可扩展的解决方案。多重荧光显微镜、深度学习分割和自动特征提取的进步现在使这变得可行。通过结合这些工具,可以一次性为数千个细胞生成丰富的结构谱,直接在其天然组织环境中进行,并使用机器学习仅从细胞器特征对细胞状态进行分组和空间映射。
在一项新的研究中,研究团队开发了空间细胞器组学(spatial Organellomics,sOrganellomics),一种成像和分析工作流程,通过测量完整组织中细胞器的丰度、形态和分布,为每个细胞生成多细胞器特征。应用于小鼠肝脏和胰腺,他们分析了数千个细胞,发现细胞器特征能够区分组织特异性细胞类型。
在肝脏中,sOrganellomics揭示,带状位置并不能完全解释细胞器定义的肝细胞类别。肝细胞并非由位置定义的平滑层,而是在经典带内形成混合群落,支持一种更精细的亚带多样性模型。与已发表蛋白质水平数据的对齐允许推断每个肝细胞类别的推定代谢功能。
5. 两篇Science论文:病毒“内战”催生CRISPR?新发现VIPR系统揭示基因编辑的病毒起源
DOI: 10.1126/science.aei0498; DOI: 10.1126/science.aei3472
虽然科学家可以操控这些机制,对DNA进行精确修改,以治疗疾病和改良作物,但他们仍不确定最早的CRISPR样免疫系统究竟如何演化。CRISPR系统利用RNA引导来寻找匹配的DNA序列,并可通过改变引导RNA的序列进行编程。CRISPR核心RNA结合蛋白的起源尤其不清楚。
第一项研究的作者——其中大多数人同时也参与了第二项研究,写道:“CRISPR-Cas系统根据其效应蛋白分为两类。Class 1系统是两者中更丰富的一类,被认为最先演化。其定义性特征是存在重复相关神秘蛋白(RAMPs),这些蛋白在CRISPR RNA(crRNA)上寡聚化,形成RNA引导的效应复合物。RAMPs是CRISPR-Cas最保守、最古老的特征之一,据推测可追溯到最后一个通用共同祖先。”
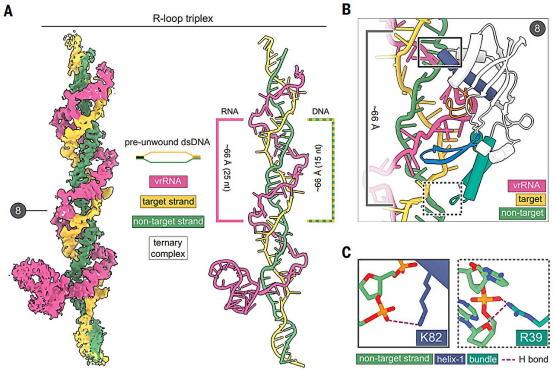
团队决定追溯RAMPs的来源,以寻找CRISPR-Cas系统的演化起源。他们采用基于结构的方法搜索RAMP样蛋白,最终鉴定出一种RNA结合蛋白,将其命名为VIPR(Viral interference programmable repeat,病毒干扰可编程重复)。VIPR存在于细菌和病毒基因组中,同时还有一种小非编码RNA,称为vrRNA,充当引导RNA。
团队表示,天然VIPR的靶标经常出现在竞争性噬菌体中——噬菌体是一种专门感染、在细菌内复制并摧毁细菌的病毒。这似乎指向病毒之间古老的“军备竞赛”。研究人员认为,VIPR系统很可能起源于病毒在竞争已入侵细菌内部的控制权时,相互失活的一种方式。
团队认为,细菌可能征用了入侵病毒所使用的VIPR系统,并将其改造成宿主防御工具。最终,这演化成了细菌中的CRISPR系统。VIPR与CRISPR之间的这一演化联系得到了强有力的支持,但目前尚无直接证据。不过,团队表示,若能鉴定出VIPR与Class 1 CRISPR之间的中间系统,将进一步支持这一模型。
6. Science:PD-1“拆散”LAT信号凝聚体,免疫检查点抑制机制被改写,芳香族残基成新开关
DOI: 10.1126/science.adt9365
PD-1(programmed cell death 1)是一种免疫抑制性受体,主要表达在活化T细胞表面;其配体PD-L1在肿瘤细胞和多种组织中表达。PD-1/PD-L1通路是当前癌症免疫治疗中最成功的靶点之一——PD-1或PD-L1阻断抗体已被广泛用于黑色素瘤、肺癌等多种恶性肿瘤。传统模型认为,PD-1胞质尾含有ITIM和ITSM抑制基序,这些基序中的酪氨酸被磷酸化后,会招募SHP-1/SHP-2等磷酸酶,使TCR/CD28信号通路中的关键分子去磷酸化,从而抑制T细胞活化。但这一模型并不能完全解释PD-1的全部抑制效应。
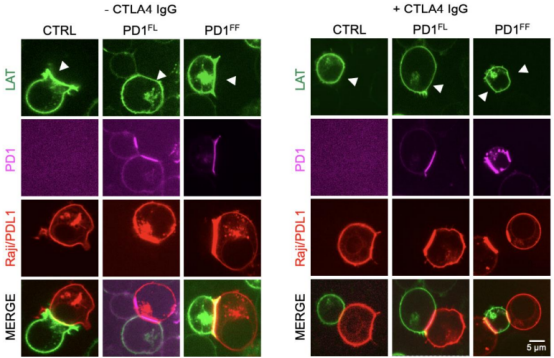
TCR(T cell receptor)识别抗原后,会诱导支架蛋白LAT(linker of activated T cells)在细胞膜上形成微簇和生物分子凝聚体(biomolecular condensates)。这些凝聚体像“信号指挥中心”,富集大量下游信号分子,是T细胞充分激活的必要条件。近年研究显示,液-液相分离形成的凝聚体在免疫信号调控中发挥核心作用。
在一项新的研究中,Sharma等人探究了免疫抑制性受体PD-1是否通过阻碍TCR诱导的LAT凝聚来发挥抑制作用。体外重建实验显示,PD-1的胞质结构域可直接抑制LAT凝聚。这种抑制性相互作用需要PD-1两个抑制基序中的酪氨酸残基。与当前主流工作模型相反,酪氨酸磷酸化反而消除了PD-1的抑制作用。将酪氨酸替换为色氨酸后,PD-1抑制在T细胞中得以重建,证实磷酸化并不介导这一效应。这些发现支持一个概念:抑制基序内能够提供氢键的芳香族残基,才是抑制性受体破坏信号网络、阻断免疫激活的主要机制。
7. Science揭示无包膜病毒入侵“全记录”:冷冻电镜揭示轮状病毒两步穿膜、钙信号开门机制
DOI: 10.1126/science.aeg4851
病毒大致可分为有包膜病毒和无包膜病毒。有包膜病毒外层有脂质膜,进入细胞相对“顺滑”;而无包膜病毒没有这层脂质外衣,必须依靠自身表面蛋白直接与宿主细胞膜“硬碰硬”,完成穿膜和入侵。恒河猴轮状病毒(rhesus rotavirus)是一种双链RNA病毒,也是导致婴幼儿严重腹泻的重要病原体。它的病毒颗粒具有多层结构,进入细胞后,内层衣壳颗粒并不会继续脱壳,而是像一个“微型工厂”一样,利用内部的聚合酶和加帽活性,直接挤出带帽的病毒mRNA,从而启动复制和转录。正因如此,它如何跨过细胞膜、把这一大分子组装体送入胞质,一直是病毒学中的核心问题。
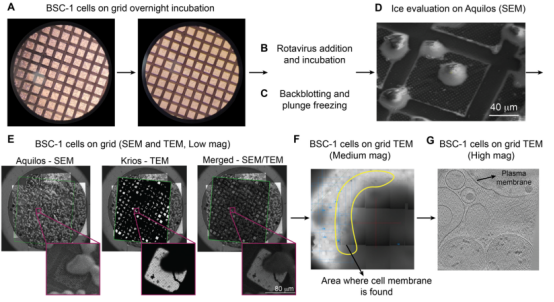
在一项新的研究中,de Sautu等人利用冷冻电子断层扫描技术可视化了恒河猴轮状病毒进入细胞的完整过程——从细胞附着、病毒体摄取,到亚病毒颗粒释放。冷冻断层图像和对分类亚颗粒的亚断层平均分析,将病毒体及其组分的高分辨率结构,与活细胞荧光显微镜的时间序列数据联系了起来。
他们发现病毒表面蛋白会执行两次连续的膜插入和钙流事件:第一次驱动病毒发生内吞,第二次则促进病毒颗粒成熟,并穿孔包裹它们的内体。这种原位重建展示了病毒表面蛋白的结构如何诱导膜变化和细胞信号,进而完成病毒摄取。
既然轮状病毒进入细胞依赖表面蛋白的两次膜插入和钙信号,那么可以设计药物阻断这些关键步骤,例如抑制膜插入、干扰钙流或阻止内体穿孔,从而在病毒复制开始前就将其“拒之门外”。理解病毒进入机制有助于开发更有效的轮状病毒疫苗,尤其是针对难以诱导保护性免疫的毒株,或优化疫苗抗原设计。
8. Science论文:小鼠Y染色体“完整地图”绘成:95.21 Mbp端粒到端粒组装,发现142个新基因
DOI: 10.1126/science.aea2249
与小鼠常染色体和X染色体不同,小鼠Y染色体是亚中着丝粒的,同时包含基因编码区和非编码调控元件,其中许多在当前参考基因组(GRCm39)中仍未被表征。Y染色体上持续存在大量序列缺口,特别是在短臂和长臂的假常染色体区(PAR)。尽管长读长测序技术已推进了Y染色体组装,但现有参考序列仍不完整,这限制了对小鼠Y染色体的功能分析。
尽管利用单倍体胚胎干细胞(mhaESCs)已实现了小鼠常染色体和X染色体的端粒到端粒(T2T)组装,但这些细胞缺乏Y染色体,使得无法采用类似的组装策略。为克服这一限制,研究团队在一项新的研究中从一只2周龄C57BL/6雄性小鼠生成了小鼠Y染色体的T2T组装(mT2T-Y)。他们整合了PacBio HiFi读长、Oxford Nanopore Technologies超长读长、Illumina短读长和Pore-C数据来组装该染色体,并全面注释其重复序列景观和编码区。
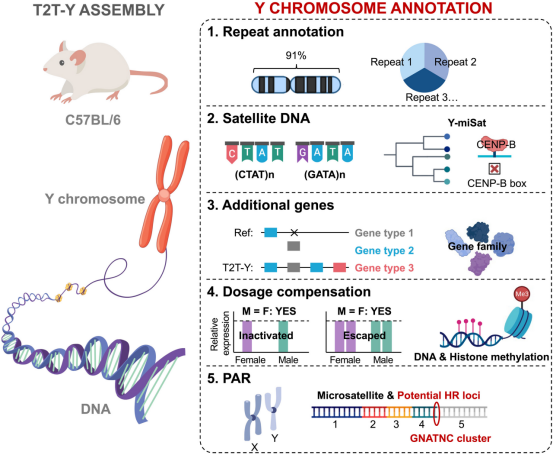
组装后的mT2T-Y全长95.21 Mbp,重复序列含量为91%,而人类Y染色体为62.46 Mbp。他们在短臂中鉴定出两个Y特异性卫星区域,为回文结构的(CTAT)n/(GATA)n阵列,携带编码长非编码RNA(lncRNA)的基因。此外,他们揭示了一个Y特异性小卫星(miSat)阵列,仅跨越0.10 Mbp,它缺乏常染色体和X染色体上存在的经典CENP-B结合基序。通过结合GENCODE vM36注释与从头预测,他们编制了小鼠Y染色体上存在的基因目录,其中包括142个此前未鉴定的基因。基因表达谱分析揭示了性染色体上同源基因之间的剂量补偿。最后,他们定义了完整的PAR,解析了其重复结构,并鉴定了一个与性染色体间减数分裂重组相关的Spo11靶向热点。
9. Science论文揭示纤毛“门户”失守:过渡区结构揭示原发性纤毛运动障碍新基因,为诊断与治疗打开大门
DOI: 10.1126/science.aei5957
被称为运动纤毛的毛发状附属物在身体许多部位的细胞上同步摆动,以保持液体和颗粒运动,例如清除肺部黏液以便咳出。
基因突变可损害纤毛结构和功能并导致疾病。例如,已知超过50个基因的改变可导致原发性纤毛运动障碍(PCD),这是一种罕见病,可损害呼吸道、内耳、心脏、生殖道和其他器官。目前,治疗只能减缓PCD进展,不能阻止或治愈,估计20%至30%的病例在遗传上仍无法解释。
由哈佛医学院和德国明斯特大学儿童医院研究人员领导的一个团队,揭示了纤毛中一个研究不足的部分,称为过渡区的详细结构和组成,表明该区域的异常可在PCD中发挥作用,并提示两个新基因与该病有关。
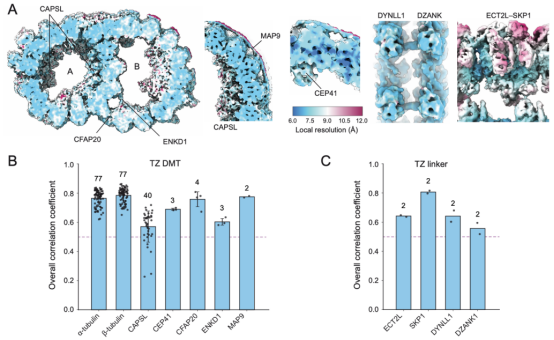
这些发现发表于《Science》,为至少部分PCD在遗传上一直成谜的患者提供了解释,并可能提高医生诊断该病的能力。这项工作还为研究人员在尝试开发治疗时提供了额外的基因和蛋白靶点。
在基础科学层面,该研究加深了对纤毛工作原理的理解,并呼吁科学家关注涉及运动纤毛疾病中的过渡区。
“这是一个例子,说明将原位结构生物学与遗传学相结合如何能够解决基本问题并阐明人类疾病的病因,”共同资深作者、HMS布拉瓦尼克研究所生物化学与分子药理学教授Alan Brown说。
10. Science揭示化疗的隐形伤痕:儿童癌症治疗在肝脏留下独特DNA损伤,健康细胞“早衰”数十年
DOI: 10.1126/science.ady0339
用于有效治疗儿童癌症的某些化疗所导致的DNA损伤量已被揭示,同时还有对肝脏的隐藏影响,为未来研究减轻这些影响的新方法铺平了道路。
铂类化疗药物在治疗癌症方面非常有效,但可能对身体其他部位产生被低估的影响。为了研究这一点,维康桑格研究所、剑桥大学、弗朗西斯·克里克研究所和伦敦国王学院的一个团队使用了新的测序技术,并在肝脏中发现了独特的DNA损伤。他们认为,进一步研究可能带来预防这种情况的新方法。
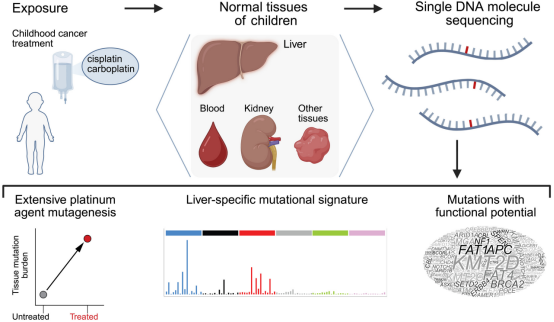
该研究发表于《Science》,研究人员还发现,化疗在有效摧毁癌细胞的同时,会使儿童的健康细胞“衰老”。这导致儿童的健康细胞拥有成年细胞在数十年间积累的相同数量的DNA变化。
这项研究为儿童癌症幸存者为何在晚年常面临健康问题(如继发性癌症或肝病)提供了一个可能的直接联系和生物学解释。
这项研究的目标不是阻止使用化疗,化疗仍然是治愈儿童癌症的关键。相反,通过确切识别这些药物如何在遗传上损伤健康组织,科学家希望未来开发出减轻或预防这些DNA变化的新方法,最终降低幸存者的长期健康风险。(生物谷Bioon.com)
版权声明 本网站所有注明“来源:生物谷”或“来源:bioon”的文字、图片和音视频资料,版权均属于生物谷网站所有。非经授权,任何媒体、网站或个人不得转载,否则将追究法律责任。取得书面授权转载时,须注明“来源:生物谷”。其它来源的文章系转载文章,本网所有转载文章系出于传递更多信息之目的,转载内容不代表本站立场。不希望被转载的媒体或个人可与我们联系,我们将立即进行删除处理。